Esta obra está bajo una Licencia Creative Commons Atribución-NoComercial-CompartirIgual 4.0 Internacional
DOI: https://doi.org/10.19137/cienvet.v28.10139
Esta obra está bajo una Licencia Creative Commons Atribución-NoComercial-CompartirIgual 4.0 Internacional
ARTÍCULO DE INVESTIGACIÓN
Sombra artificial y estrés por calor en terneros de destete anticipado: respuestas fisiológicas, bioquímicas y productivas
Artificial shade and heat stress in early-weaned calves: physiological, biochemical, and productive responses
Sombra artificial e estresse por calor em bezerros de desmame precoce: respostas fisiológicas, bioquímicas e produtivas
Genero GA1 https://orcid.org/0000-0001-5084-2407 Jaurena G2 https://orcid.org/0000-0002-3687-5648 Boeris MA1 https://orcid.org/0009-0001-1446-0011 Gerena A1 https://orcid.org/0009-0006-5728-4691
Meglia GE1 https://orcid.org/0000-0001-7111-0301 Tobal CF1 https://orcid.org/0009-0006-5817-3635 Bilbao MG1 https://orcid.org/0000-0002-8324-4355 Lascalea GM3 https://orcid.org/0009-0003-1115-2819
Azaldegui I1 https://orcid.org/0009-0005-1933-2827
Aristi M1 https://orcid.org/0009-0007-6799-1258 Pechin GH1 https://orcid.org/0000-0001-7341-5897
1Universidad Nacional de La Pampa, Facultad de Ciencias Veterinarias, calle 5 esquina 116 (L6360), General Pico, La Pampa, Argentina.
2Universidad de Buenos Aires, Facultad de Agronomía, Cátedra de Nutrición Animal, Avenida San Martín 4453 (C1417DSE), Ciudad Autónoma de Buenos Aires, Argentina.
3Tecnovax, S.A., Uruguay 2887 (B1644HJI), Victoria, Buenos Aires, Argentina.
Correo electrónico: generog@vet.unlpam.edu.ar
Fecha de recibido: 19 de agosto de 2026 Fecha de aceptado para su publicación: 17 de septiembre de 2026
Resumen
El objetivo de este trabajo fue evaluar el efecto de la provisión de sombra artificial en verano sobre parámetros fisiológicos, metabólicos y productivos de terneros de raza británica en la región pampeana. Veinticuatro terneros (3 - 4 meses de edad) se asignaron a 12 corrales durante 64 días. La mitad de los corrales tuvo sombra (CS) y la otra mitad se dejó expuesta a la radiación solar directa (SS). La ganancia diaria de peso (GDP) y la eficiencia de conversión alimenticia (ECA) tendieron a ser mayores en CS que en SS. La frecuencia respiratoria (FR) fue menor en CS, mientras que la temperatura rectal (TR) a las 7:00 am tendió a ser 0,1 °C mayor en CS. A las 5:00 pm, la TR tendió a ser 0,2 °C mayor el día 5 y 0,2 °C menor el día 18 en CS que en SS. En la primera ola de calor (días 8 al 14 del experimento), los terneros de ambos grupos presentaron disminución en las concentraciones séricas de glucosa, colesterol y urea, y aumento en la concentración de la enzima glutamato oxalacetato transaminasa. El consumo de materia seca (CMS) y las concentraciones séricas de los metabolitos evaluados no fueron afectados por la sombra. En conclusión, la provisión de sombra a terneros de destete anticipado tendió a incrementar la GDP y la ECA y disminuyó la FR, sin afectar el CMS y el perfil metabólico evaluado, mientras que los efectos sobre la TR fueron de pequeña magnitud y fisiológicamente poco relevantes.
Palabras clave: Estrés por calor, Sombra, Terneros
Abstract
The objective of this study was to evaluate the effect of artificial shade during summer on the physiological, metabolic, and productive parameters of British-breed calves in the Pampas region. Twenty-four calves (3-4 months of age) were allocated to 12 pens for 64 days. Half of the pens were provided with artificial shade (S), whereas the remaining pens were exposed to direct sunlight (NS). Average daily gain (ADG) and feed conversion efficiency (FCE) tended to be higher in S than in NS. Respiratory rate (RR) was lower in S, whereas rectal temperature (RT) at 7:00 am tended to be 0.1 °C higher in S. At 5:00 pm, RT tended to be 0.2 °C higher on day 5 and 0.2 °C lower on day 18 in S than in NS. During the first heat wave (days 8-14 of the experiment), calves in both groups exhibited decreased serum concentrations of glucose, cholesterol and urea, and increased glutamate oxaloacetate transaminase enzyme concentration. The dry matter intake (DMI) and serum concentrations of the evaluated metabolites were not affected by shade. In conclusion, providing artificial shade to early weaned calves increased ADG and FCE and decreased RR without affecting DMI or metabolic profile evaluated, while its effects on RT were low and physiologically irrelevant.
Keywords: Heat stress, Shadow, Calves
Resumo
O objetivo deste trabalho foi avaliar o efeito do fornecimento de sombra artificial no verão sobre parâmetros fisiológicos, metabólicos e produtivos de bezerros de raças britânicas na região pampeana. Vinte e quatro bezerros (3-4 meses de idade) foram distribuídos em 12 baias durante 64 dias. Metade das baias dispunha de sombra (CS) e a outra metade foi mantida exposta à radiação solar direta (SS). O ganho diário de peso (GDP) e a eficiência de conversão alimentar (ECA) tenderam a ser maiores no CS do que no SS. A frequência respiratória (FR) foi menor no CS, enquanto a temperatura retal (TR) às 7:00 am tendeu a ser 0,1 °C maior no CS. Às 5:00 pm, a TR tendeu a ser 0,2 °C maior no dia 5 e 0,2 °C menor no dia 18 no CS do que no SS. Na primeira onda de calor (dias 8 a 14 do experimento), os bezerros de ambos os grupos apresentaram diminuição nas concentrações séricas de glicose, colesterol e ureia, e aumento na concentração da enzima glutamato oxalacetato transaminase. O consumo de matéria seca (CMS) e as concentrações séricas dos metabólitos avaliados não foram afetados pela sombra. Em conclusão, o fornecimento de sombra a bezerros de desmame precoce tendeu a aumentar o GDP e a ECA e diminuiu a FR, sem afetar o CMS nem o perfil metabólico avaliado, ao passo que os efeitos sobre a TR foram de pequena magnitude e fisiologicamente pouco relevantes.
Palavras clave: Estresse por calor, Sombra, Bezerros
Introducción
Según las proyecciones del Panel Intergubernamental sobre Cambio Climático (IPCC), la temperatura media global podría aumentar 1,5 °C en los próximos 20 años, acompañada de un incremento en la frecuencia de días calurosos y olas de calor (1). Este escenario representa un desafío para los sistemas de producción animal, ya que el estrés térmico puede afectar negativamente el bienestar, la salud, la reproducción y el desempeño productivo de las especies de interés zootécnico (2,3,4,5).
En las últimas décadas, el sector ganadero se ha focalizado en el incremento de la productividad mediante mejoras en el ambiente y el manejo nutricional. Sin embargo, la búsqueda de estrategias para paliar las consecuencias del estrés térmico no ha sido debidamente abordada ni desde la academia ni desde el sector productivo (3). Por el contrario, el incremento logrado en la productividad se ha asociado con una disminución en la plasticidad térmica y un aumento de la sensibilidad de los animales a los ambientes calurosos (3).
El estrés por calor afecta el desempeño productivo de los bovinos en forma indirecta, por disminución del consumo, o directa, por alteraciones del metabolismo y la partición de nutrientes (2,6). Entre los principales efectos directos del estrés por calor sobre el metabolismo se describen el aumento de la insulinemia y de la oxidación de glucosa, la disminución de la lipólisis y de las concentraciones plasmáticas de ácidos grasos no esterificados, el incremento de la proteólisis muscular, alteraciones en el equilibrio ácido/base (2,6), cambios en la colesterolemia (7), aumento en los niveles séricos de transaminasas hepáticas (8), entre otros.
Los efectos del estrés por calor sobre el metabolismo del animal podrían ser mediados por una alteración en la estructura histológica y en la función de barrera del epitelio intestinal. Estas alteraciones aumentan la permeabilidad del intestino a bacterias y endotoxinas bacterianas residentes en el lumen del aparato digestivo, lo cual desencadena una respuesta inflamatoria aguda (2). La activación del sistema inmunológico durante este proceso inflamatorio incrementa la demanda de glucosa por los leucocitos y reduce su disponibilidad para las funciones productivas (2,9,10), entre ellas, la ganancia de peso.
Si bien el estrés térmico ha sido ampliamente investigado en los sistemas de producción lechera, no se ha abordado de la misma manera en la producción de carne (11). Los sistemas de producción de carne bovina de la República Argentina, en especial de la región pampeana, reúnen una serie de condiciones que aumentan la probabilidad de ocurrencia de estrés por calor. Algunas son inherentes al sistema productivo y su modificación no es sencilla, por lo menos a corto y mediano plazo. Por ejemplo, la cría, la recría y el engorde de los bovinos se realiza al aire libre y, por lo tanto, la exposición a las condiciones naturales con escaso o nulo control de las variables ambientales reduce la previsibilidad de la respuesta animal. A esto se suma que la mayoría de los bovinos que se encuentran en la región pertenecen a la especie Bos taurus, más susceptibles a las altas temperaturas que los Bos indicus(12), y un gran porcentaje de estos posee una cubierta externa oscura que absorbe mayor cantidad de la radiación calórica y disminuye la tolerancia al estrés térmico (4,13,14).
De acuerdo con las estadísticas publicadas por el Servicio Meteorológico Nacional (SMN) para General Pico, La Pampa, en los últimos 10 años se registraron 13 eventos de olas de calor, con una duración entre 3 y 7 días, y temperaturas mínimas absolutas entre 21,6 y 25,6 °C y temperaturas máximas absolutas entre 34,6 y 41,4 °C (15). Los registros desde el verano 1961/62 indican una tendencia a un incremento en la temperatura mínima media entre 1 a 1,5°C en los meses de verano para esta región (15), lo cual podría ser un impedimento para la eliminación de calor o enfriamiento de los animales durante los momentos más fríos del día.
La provisión de sombra artificial reduce la carga calórica sobre los animales mediante la disminución de la radiación solar directa. Si bien existen otras medidas para mitigar los efectos de las altas temperaturas, como el uso de ventiladores y aspersores, la implementación de sombra ha sido más estudiada y tiene el potencial de adaptarse más fácilmente a una mayor variedad de diseños de instalaciones, ya que su implementación no depende de otros recursos, como la electricidad y el agua (11). Sin embargo, aunque existe consistencia en la bibliografía acerca de los efectos positivos de la sombra sobre algunas variables fisiológicas en bovinos para carne, como la temperatura corporal, la frecuencia respiratoria (FR) y el índice de jadeo, parece no ser el caso cuando se evalúa su impacto sobre el desempeño productivo (16-25).
Esta inconsistencia entre los resultados publicados del efecto de la sombra sobre parámetros productivos podría deberse a variaciones en la nutrición y el genotipo de los animales, las características propias de la estructura de sombra (26) y las condiciones atmosféricas particulares de la región donde fueron realizados los trabajos. Como consecuencia, los efectos observados son heterogéneos, lo que dificulta la obtención de conclusiones generales sobre el impacto de la sombra en diferentes ambientes (11). Algunos trabajos postulan que, si bien la intercepción de la radiación solar mediante sombra natural o artificial puede ser una de las medidas más rentables para disminuir el impacto negativo del estrés por calor en regiones cálidas, su implementación podría no justificarse en regiones más templadas con baja frecuencia de estrés térmico (27).
En la provincia de La Pampa, el destete precoz y el anticipado constituyen herramientas de manejo ampliamente utilizadas debido a la disminución de la calidad nutricional de los pastizales naturales del Caldenal durante el período estival. La implementación de estas estrategias tiene como objetivo reducir los requerimientos nutricionales de las madres y mejorar los índices reproductivos del rodeo. Sin embargo, desde el punto de vista de los terneros, la realización de estos tipos de destete suele coincidir con los meses de mayor temperatura ambiental, lo que incrementa el riesgo de exposición al estrés por calor. La mayoría de los trabajos citados acerca de los efectos de la sombra sobre el desempeño productivo de bovinos han sido realizados en otros países y con animales en engorde y, si bien existe un gran número de trabajos y revisiones bibliográficas acerca de los efectos del estrés térmico sobre vacas lecheras y sus crías (2,28), hay poca información en terneros de razas carniceras.
El objetivo de este trabajo fue evaluar el efecto de la provisión de sombra artificial en verano sobre parámetros fisiológicos, metabólicos y productivos de terneros de raza británica, destetados con 3 a 4 meses de edad, en la región pampeana.
Materiales y métodos
a) Lugar
El experimento se llevó a cabo en el Campo Escuela Unidad Didáctica Experimental y Productiva (UDEP) “Dr. Hugo Roberto Álvarez” de la Facultad de Ciencias Veterinarias de la Universidad Nacional de La Pampa (FCV-UNLPam), ubicado en General Pico, La Pampa, desde diciembre de 2020 hasta marzo de 2021.
b) Tratamientos, animales y manejo
El trabajo fue aprobado por la Comisión Asesora Interna para el Cuidado y Uso de Animales de Experimentación de la FCV, UNLPam, acta N° 14/20. Se utilizaron 24 terneros Angus × Hereford, color de capa negro, 12 machos y 12 hembras, con una edad entre 3 y 4 meses, provenientes de un rodeo de cría, ubicado en la zona del Bosque de Caldén, en la provincia de La Pampa.
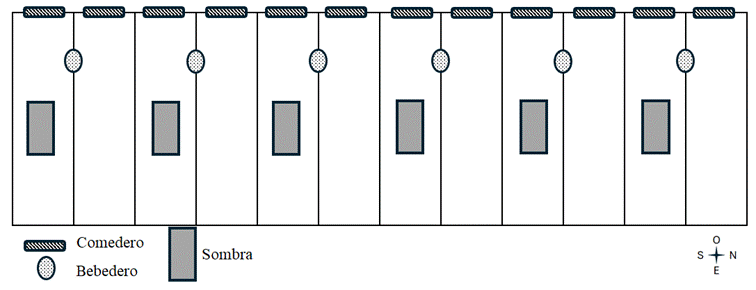
Se definieron dos tratamientos: sin sombra (SS) y con sombra (CS). Para ello, se contó con 12 corrales (5 m × 30 m), de los cuales seis fueron provistos de sombra artificial mediante una tela de polipropileno negra con 80 % de intercepción de la luz. La estructura de sombra tuvo una superficie de 2 por 4 m y se instaló a 4 m de altura. Los 6 corrales restantes quedaron totalmente expuestos a la radiación solar directa (Figura 1).
Figura 1. Esquema de los corrales experimentales donde se aplicaron los tratamientos sin sombra (SS) y con sombra (CS). Las medidas no están en escala.
Los animales ingresaron a mediados de diciembre de 2020 y fueron alojados durante 15 días en un único corral para permitir la adaptación a una dieta con concentrados. Finalizado el período de adaptación, los animales se clasificaron por sexo y peso para confeccionar 6 bloques: hembras de bajo, mediano y alto peso vivo y machos de bajo, mediano y alto peso vivo. Finalmente, se asignaron aleatoriamente los tratamientos dentro de cada bloque y los animales fueron alojados en los corrales experimentales (2 animales por corral).
Después de 10 días, se comenzó con el período experimental, considerándose como el día 0. El experimento tuvo una duración de 64 días, entre el 11 de enero y el 15 de marzo de 2021.
La ración estuvo compuesta por 40 % de heno de alfalfa y 60 % de un balanceado comercial para destete precoz (18 % proteína bruta [PB] y 3,0 Mcal EM/kg materia seca [MS]) y se suministró en dos entregas diarias (8:00 am y 5:00 pm), en una cantidad equivalente al 3,2 % del peso vivo (base MS). La cantidad ofrecida de alimento se ajustó semanalmente con el objetivo de mantener un remanente cercano al 5 % y permitir un consumo ad libitum.
c) Registro de variables meteorológicas
La temperatura ambiente (TA, °C) y la humedad relativa (HR, %) se registraron cada media hora con una estación meteorológica (Vantage Pro2, Davis Instruments©, EE. UU.) ubicada a 350 m de los corrales experimentales. Con esta información se calculó el índice de temperatura y humedad (ITH), según la siguiente ecuación (29):
ITH= (0,8 × TA) + [(HR × 0,01) × (TA – 14,4)] +
46,4
donde, ITH es el índice de temperatura y humedad, HR es la humedad relativa (%) y TA es la temperatura ambiente (°C).
Los días 13, 26, 38, 52, 56 y 61 del período experimental se midió la temperatura de la superficie del suelo en 3 corrales con sombra y 3 corrales sin sombra, debajo y fuera de la sombra (6 puntos distintos por corral; 4:00 pm), por medio de un termómetro por infrarrojo (Testo 830-T4, Alemania).
d) Medición del peso vivo y ganancia diaria de peso
Los animales se pesaron sin desbaste previo, con balanza electrónica, el primer día del experimento y luego cada 21 días antes del suministro matutino de la ración (7:00 am). Con el dato del peso vivo y los días entre pesadas, se calculó la ganancia diaria de peso (GDP; g/día) en cada período de 21 días.
e) Consumo de materia seca y eficiencia de conversión alimenticia
El consumo de materia seca (CMS; kg/día) fue medido durante 3 días consecutivos por semana por diferencia entre la oferta y el rechazo del alimento. Se recolectaron muestras de ambas porciones para la determinación de MS. La eficiencia de conversión alimenticia (ECA) para cada período entre pesadas se calculó como el cociente entre la GDP y el CMS.
f) Variables fisiológicas
La FR se registró una vez por semana (3:00 pm) para todos los animales contando los movimientos del flanco derecho durante 15 s. El dato resultante se multiplicó por cuatro para expresar el valor en movimientos respiratorios por minuto (mrpm). Además, semanalmente, se midió en la manga la temperatura rectal (TR; °C; 7:00 am y 5:00 pm) utilizando un termómetro digital (Citizen CTA301C, Vega Technologies Inc., China).
g) Variables bioquímicas y hematológicas
Durante el mismo día y momento en que los animales fueron pesados, se extrajo una muestra individual de sangre sin anticoagulante por punción de la vena yugular. Las muestras fueron llevadas inmediatamente al laboratorio, donde se extrajo el suero y se determinó la concentración de glucosa. El resto de la muestra de suero se congeló a – 20 °C para la posterior determinación de colesterol, urea, glutamato oxalacetato transaminasa (GOT) y glutamato piruvato transaminasa (GPT). Todas las determinaciones en suero fueron realizadas por métodos colorimétricos (Laboratorio Wiener, Argentina) mediante un autoanalizador (Intelligent Clinical Chemistry Analyzer, Diconex S.A., Argentina). Este mismo procedimiento se aplicó después de finalizadas las dos olas de calor que tuvieron lugar durante el experimento (días 14 y 56).
h) Análisis estadístico
Las condiciones ambientales se caracterizaron por estadística descriptiva de la TA, HR e ITH.
Las variables respuesta se analizaron bajo un diseño experimental en bloques completos al azar, con el corral como unidad experimental (n = 6). Para el análisis estadístico se utilizó el entorno RStudio del software R (30). El nivel de significancia estadística se estableció en P ≤ 0,05, mientras que valores de P entre 0,05 y 0,1 fueron considerados como una tendencia.
Para el caso de las variables peso inicial y final, se utilizó un modelo lineal mixto que incluyó al tratamiento como efecto fijo y al bloque y el corral como efectos aleatorios. El modelo fue definido como:
Yijkl = µ + Trati + Bloquej + Corralk + εijkl
donde, Yijkl es la variable respuesta; µ es la media general; Trati es el efecto fijo del tratamiento (SS o CS); Bloquej es el efecto aleatorio del bloque; Corralk es el efecto aleatorio del corral y εijkl es el error residual.
Para las variables medidas a través del tiempo (GDP, CMS, ECA, FR, TR y metabolitos séricos), al modelo anterior se le adicionó el efecto fijo del tiempo y la interacción tratamiento × tiempo, y se utilizó una matriz de covarianzas para considerar la falta de independencia y la correlación temporal entre las observaciones, basándose en el criterio de Akaike para la selección de dicha matriz. El modelo fue definido como:
Yijklm = µ + Trati + Tj + (Trat × T) ij + Bloquek + Corrall + εijklm
donde Yijklm es la variable respuesta; µ es la media general; Trati es el efecto fijo del tratamiento (SS o CS); Tj es el efecto fijo del tiempo; (Trat × T) ij es el efecto fijo de la interacción entre tratamiento y tiempo; Bloquek es el efecto aleatorio del bloque; Corralk es el efecto aleatorio del corral y εijklm es el error residual.
Cuando la interacción tratamiento × tiempo resultó significativa (P ≤ 0,05), se obtuvieron las medias marginales estimadas y se hicieron comparaciones pareadas con ajuste de Tukey.
Resultados
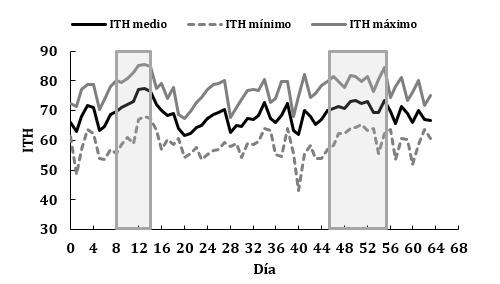
Durante el período experimental, la TA media fue de 22,2 °C, con un mínimo de 5,5 °C y un máximo de 36,4 °C. El ITH medio, mínimo y máximo fue de 69, 43 y 86, respectivamente (Figura 2). Se registraron valores de ITH mayores a 75 durante 362 horas. La temperatura media de la superficie del suelo debajo de la sombra fue 33,4 °C, mientras que fuera de la misma fue de 53,5 °C.
Se registraron dos eventos de olas de calor (horas del día con ITH ≥ 79 por más de 3 días consecutivos; Figura 2). La primera ola de calor tuvo una duración de 7 días (del 19 al 25 de enero, días 8 al 14 del experimento), durante la cual los animales estuvieron expuestos a un estrés moderado (ITH ≥ 79) durante 55 h y a un estrés severo (ITH ≥ 84) por 14 h. La segunda ola de calor tuvo una duración de 11 días (25 de febrero al 7 de marzo, días 45 al 55 del experimento), y en este caso los animales estuvieron expuestos por 46,5 y 3,5 h a estrés moderado y severo, respectivamente. Si bien en este último evento se registraron dos días donde el ITH máximo no llegó a 79 (día 48, ITH máximo = 78, día 53, ITH máximo = 76), se consideró al conjunto de los 11 días como un único evento de ola de calor.
La GDP y la ECA tendieron a ser 11 y 7 % mayores (P < 0,1), respectivamente, en el grupo CS respecto al SS, mientras que no hubo diferencias en el CMS (Tabla 1).
La FR fue entre 24 y 46 mrpm menor en los terneros CS respecto a los SS (P < 0,05), excepto durante el día 42, donde la diferencia fue de menor magnitud, 17 mrpm (P = 0,061), asociada a la menor cantidad de horas con ITH ≥ 75 registradas en ese día (Figura 3), lo cual explica la interacción entre tratamiento y tiempo (P < 0,01; Tabla 2). La TR a las 7:00 am tendió a ser 0,1 °C mayor en el grupo CS que en el SS (P = 0,063). En el caso de la TR a las 5:00 pm, la interacción entre tratamiento y tiempo fue significativa, y se debió a tendencias detectadas en los días 5 y 18, donde la TR del grupo CS fue 0,2 °C mayor (P = 0,058) y 0,2 °C menor (P = 0,069) que en el grupo SS, respectivamente (Tabla 2).
No hubo diferencias en las concentraciones séricas de glucosa, colesterol, urea, GOT y GPT entre los terneros SS y CS (Tabla 2). Sin embargo, para todos los metabolitos evaluados el efecto tiempo resultó significativo (P < 0,01; Tabla 2). En la medición del día 14, correspondiente a la primera ola de calor, los animales de ambos tratamientos tuvieron una disminución en las concentraciones de glucosa, colesterol y urea, y un aumento en las de GOT.
Figura 2. Valores medios, mínimos y máximos del índice de temperatura y humedad (ITH) registrados durante el período experimental. ITH= (0,8 × TA) + [(HR × 0,01[.1]) × (TA – 14,4)] + 46,4; donde: TA, temperatura ambiente (°C) y HR, humedad relativa (%). Las áreas sombreadas corresponden a eventos de olas de calor (ITH ≥ 79 por más de 3 días).
|
Tabla 1. Medias estimadas y error estándar (EE) de variables productivas de terneros sin sombra (SS) y con sombra (CS). |
||||||
|
|
SS |
CS |
EE |
P valor 1 |
||
|
Trat |
T |
Trat × T |
||||
|
Peso inicial (kg) |
116 |
112 |
4,7 |
0,384 |
- |
- |
|
Peso final (kg) |
180 |
183 |
6,6 |
0,599 |
- |
- |
|
GDP (kg/día) |
1,03 |
1,14 |
0,034 |
0,065 |
<0,0001 |
0,846 |
|
CMS (kg/día) |
4,0 |
4,0 |
0,15 |
0,763 |
<0,0001 |
0,108 |
|
ECA (GDP:CMS) |
262 |
281 |
8,7 |
0,063 |
0,0002 |
0,941 |
|
1) Efectos de tratamiento (Trat), tiempo (T) e interacción entre Trat y T (Trat × T). GDP: ganancia diaria de peso; CMS: consumo de materia seca; ECA: eficiencia de conversión alimenticia (GDP/CMS). |
||||||
|
Tabla 2. Medias estimadas y error estándar (EE) de variables fisiológicas y bioquímicas de terneros sin sombra (SS) y con sombra (CS). |
||||||
|
|
SS |
CS |
EE |
P valor 1 |
||
|
|
Trat |
T |
Trat × T |
|||
|
FR (mrpm) |
133 |
99 |
3,33 |
<0,0001 |
<0,0001 |
<0,0001 |
|
TR – 7:00 am (°C) |
39,15 |
39,23 |
0,03 |
0,063 |
<0,0001 |
0,423 |
|
TR – 5:00 pm (°C) |
39,78 |
39,71 |
0,03 |
0,752 |
<0,0001 |
0,022 |
|
Glucosa (mg/dl) |
67,2 |
69,9 |
2,52 |
0,256 |
<0,0001 |
0,803 |
|
Colesterol (mg/dl) |
131 |
137 |
5,38 |
0,516 |
<0,0001 |
0,754 |
|
Urea (g/l) |
0,27 |
0,28 |
0,01 |
0,476 |
<0,0001 |
0,873 |
|
GOT (U/l) |
78,6 |
76,3 |
3,05 |
0,992 |
0,0002 |
0,537 |
|
GPT (U/l) |
19,9 |
18,4 |
0,93 |
0,134 |
0,0006 |
0,141 |
|
1) Efectos de tratamiento (Trat), tiempo (T) e interacción entre Trat y T (Trat × T). TR: temperatura rectal medida a las 7:00 am y 5:00 pm; FR: frecuencia respiratoria en movimientos respiratorios por minuto (mrpm); GOT: transaminasa glutámico-oxalacética; GPT: glutamato-piruvato transaminasa. |
||||||
Figura 3. Medias estimadas ± error estándar de la frecuencia respiratoria (FR), expresada en movimientos respiratorios por minuto (mrpm), en terneros sin sombra (SS) y con sombra (CS), y cantidad de horas diarias con un ITH ≥ 75. Los asteriscos indican diferencias entre tratamientos dentro de cada día de medición (Test de Tukey; *, P < 0,10; **, P < 0,05).
Discusión
La provisión de sombra es una medida para disminuir la carga calórica y brindar mayor bienestar a los animales, ya que reduce la radiación solar directa. En este trabajo, la sombra redujo la temperatura de la superficie del suelo en 20,1 °C, resultado que coincide con lo publicado por otros autores (19,26). En cuanto a la superficie de sombra disponible por animal, en el presente experimento se asignaron 4 m2 por ternero, valor superior a las recomendaciones norteamericanas para esta categoría, que oscilan entre 0,7 a 1,2 m2 por animal (31,32).
El efecto positivo de la sombra sobre la GDP está de acuerdo con otros estudios realizados en el exterior con novillos y vaquillonas en engorde a corral (18,19,21). Sin embargo, contrario a nuestros resultados, los estudios citados encontraron diferencias en el CMS, donde los animales CS tuvieron consumos entre 2,9 y 7,5 % superiores a los de SS (18,19,21), lo cual podría explicar las mayores GDP. En concordancia con nuestro trabajo, Edwards-Callaway et al.(11), en un metaanálisis, observaron que la provisión de sombra aumentó la GDP en 70 g por día y mejoró un 3,4 % la ECA, mientras que no tuvo efecto sobre el CMS. Probablemente, el mejor desempeño productivo de los terneros CS, evidenciado a través de la mayor GDP y ECA, sin un incremento en el CMS, pueda explicarse por menores requerimientos energéticos de mantenimiento, derivados de un menor costo energético asociado a la termorregulación(11). La menor FR de los terneros CS respecto a los SS es congruente con que el primer grupo de animales incurrió en menor grado en estrategias de pérdida de calor. No obstante, esto es solo una especulación dado que, los requerimientos de mantenimiento no fueron medidos en este trabajo.
Más allá de lo expuesto, los efectos de la provisión de sombra sobre el desempeño productivo de bovinos no son consistentes entre los diferentes estudios. En algunos trabajos la provisión de sombra no afectó el CMS ni la GDP (16,20,22,23) o tuvo efectos positivos sobre el CMS, pero esto no se trasladó a mejoras en la GDP (33). En otro estudio, Mader et al. (17) observaron un efecto positivo sobre la GDP y la ECA durante los primeros 56 días de duración del experimento, aunque no detectaron diferencias en el análisis global, lo cual sugeriría una posible aclimatación de los animales a las altas temperaturas que diluiría las ventajas de la sombra cuando se analiza el ciclo completo. En otros casos, cuando ocurrieron períodos de olas de calor, tanto los animales CS como SS disminuyeron la ingesta de alimento, aunque la reducción en el CMS fue de menor magnitud en los grupos CS (16,21,26). Esta inconsistencia entre los resultados publicados puede responder a variaciones en la nutrición y el genotipo de los animales, en las características de la sombra, como el tipo de material, la estructura y superficie sombreada por animal (26) y las características ambientales propias de la región donde se realizan los experimentos, lo cual resalta la importancia de los resultados obtenidos a nivel local por el presente trabajo.
La sombra disminuyó la carga calórica de los animales, evidenciada por la menor FR del tratamiento CS, lo cual coincide con lo publicado por varios autores (16,17,18,19,20,34). Diversos trabajos demostraron que la provisión de sombra artificial disminuye la proporción de animales con presencia de jadeo o con signos de estrés térmico severo (21,26,33,35). El aumento de la FR y el mecanismo de jadeo permiten incrementar las pérdidas de calor a través de la vaporización de agua del aparato respiratorio por la nariz y la boca (36). No obstante, este mecanismo de termorregulación puede implicar un gasto extra de energía para el animal y un incremento en el costo energético para mantenimiento, lo cual podría asociarse a las diferencias en GDP entre los terneros CS y SS, como fue explicado.
En nuestro experimento, la temperatura corporal no sufrió cambios de importancia biológica cuando se les proporcionó sombra a los animales y coincide con lo publicado por Mitlöhner et al. (18), aunque contrasta con otros trabajos, en los cuales los animales CS presentaron menor TR que los expuestos a la radiación solar directa (16,20,21,34). Brown-Brandl et al. (34) registraron la TR a una frecuencia de una lectura por minuto en novillos SS y CS, en cuatro categorías de estrés térmico por calor: normal, alerta, peligro y emergencia. Cuando la TR se analizó como promedio diario, no se detectaron diferencias entre los tratamientos SS y CS en ninguna de las categorías de estrés térmico. Sin embargo, el análisis por hora reveló diferencias entre los grupos, observándose que, durante un número variable de horas y según la categoría de estrés térmico considerada, los terneros CS presentaron una menor TR. Es probable que la frecuencia de registro de esta variable haya sido una limitante en nuestro experimento, en el que la medición de TR fue de una vez a la semana, en solo dos momentos del día.
Las ligeras diferencias en TR-7:00 am (0,1 °C mayor en CS) coincide con el estudio de Brown-Brandl et al. (34), donde los novillos CS presentaron mayor TR durante la noche y las primeras horas de la mañana, dentro de las categorías de estrés térmico de alerta y emergencia. Los autores atribuyeron estos resultados a una menor pérdida de calor por radiación de los animales CS, probablemente por permanecer debajo de la estructura de sombra durante parte de ese tiempo (34), aspecto que no puede comprobarse en el presente experimento. En otro trabajo, Gaughan et al. (20) también encontraron que la TR de los animales SS fue menor a los CS en la medición vespertina. Los autores argumentaron que la mayor FR de los animales SS durante la tarde permitió disipar mayor cantidad de calor y, como resultado, disminuir la temperatura corporal al momento de la medición (20).
Más allá de lo discutido, las diferencias de TR registradas en nuestro experimento entre los grupos podrían carecer de significancia biológica debido a su pequeña magnitud. Las diferencias entre CS y SS no superaron los 0,1 °C, comparado, por ejemplo, con los valores hallados por Gaughan et al. (20), de 0,4 a 0,7 °C. Finalmente, algunos autores sugieren que la medición de la temperatura en otras regiones corporales, como a nivel de la piel del oído, podría ser más apropiada para estimar el estrés por calor agudo que la TR (37).
La disminución de la glucemia en los terneros de ambos grupos en la primera ola de calor coincide con lo hallado en otros trabajos donde, animales con estrés calórico tuvieron menor concentración de glucosa en sangre comparados con aquellos mantenidos en un ambiente termoneutral (7,8,38,39,40). Probablemente, esta disminución de la glucemia esté asociada con un aumento en la demanda y la oxidación de glucosa, como consecuencia del estrés térmico. Varios estudios demostraron un aumento en la secreción de insulina en animales con estrés térmico por calor y un aumento de las necesidades de glucosa por algunos tejidos, como el sistema inmunológico (2,10).
La disminución del colesterol sérico durante la primera ola de calor está de acuerdo con Singh et al. (39) y Blond et al. (7). Estos autores especulan que la disminución del colesterol durante los períodos de estrés térmico puede deberse a una concentración limitante de ácido acético en el plasma sanguíneo, precursor de la síntesis de colesterol, y a un aumento de la síntesis de esteroides suprarrenales debido al incremento de la actividad de la ACTH durante el estrés (39). No obstante, los resultados son contrarios a los observados en otras especies. Fang et al. (41) hallaron que el estrés térmico a corto plazo alteró el metabolismo del colesterol en cerdos en crecimiento y aumentó su concentración sérica, al reducir la síntesis hepática y promover la liberación a la sangre (41). Los autores postulan que la elevación del colesterol sérico podría servir como un mecanismo de defensa primario frente al daño celular en la etapa temprana de la exposición al calor, mediante la modificación de la permeabilidad de las membranas (41). Sin embargo, las respuestas parecen depender de la duración del estrés por calor, ya que se observó que las concentraciones séricas de colesterol no difirieron entre grupos de cerdos con y sin exposición al calor a los 7(42) y 21(43) días de exposición a estrés térmico, lo cual está de acuerdo con lo hallado en el presente experimento en la segunda ola de calor.
La menor concentración sérica de urea en los animales de ambos tratamientos durante la primera ola de calor está de acuerdo con lo publicado por Nazifi et al. (38) en cabras y Johnson et al. (44,45) en cerdos. Estos resultados no coinciden con los publicados por otros investigadores, en los que los animales con estrés por calor presentaron una elevación de las concentraciones séricas de urea (2,7,46,47). Se piensa que este incremento de los niveles de nitrógeno ureico en el plasma de los animales con estrés térmico podría deberse a un aumento de la proteólisis muscular y/o a una menor incorporación de aminoácidos y menor síntesis proteica por el músculo, con el objetivo de aumentar el suministro de sustratos al hígado para la síntesis de glucosa y/o proteínas de choque térmico (47). No obstante, si bien el estrés térmico por calor puede incrementar los niveles de uremia, el efecto puede depender de la duración y severidad del evento (44). En un trabajo con cerdos se observó un aumento de la uremia en el día 1 de exposición a estrés calórico, pero una disminución en los días 3 y 7(42). Por otra parte, aunque en el presente estudio no se dispone de un análisis del CMS por día, es probable que una reducción en el consumo de alimento durante los días correspondientes a la primera ola de calor haya contribuido a la disminución de las concentraciones de urea sérica, como consecuencia de una menor ingestión de proteína degradable a nivel ruminal. Finalmente, otro trabajo llevado a cabo con terneros no encontró efecto del estrés por calor sobre las concentraciones de nitrógeno ureico en plasma y los autores sugieren algunos otros biomarcadores como indicadores del catabolismo proteico muscular, como la 3-metilhistidina o la creatina (48).
El incremento en las concentraciones de GOT coincide con lo hallado en otros trabajos en ovinos, búfalos y cabras (7,8,38,39,40), pudiéndose corresponder con una alteración en la función hepática, producto del estrés térmico.
Más allá de los efectos de la provisión de sombra sobre parámetros productivos, fisiológicos y metabólicos, es importante considerar el beneficio sobre el bienestar animal. La provisión de un entorno más favorable y preferido por los animales les permite que puedan elegir el momento y la forma de uso de la sombra, lo cual conllevaría a que experimenten estados de bienestar más positivos (11).
Resulta necesario realizar estudios que evalúen la viabilidad económica de la implementación de infraestructuras de sombra a escala comercial, considerando tanto los costos asociados con su adopción y mantenimiento, así como el tiempo requerido para amortizar la inversión en función de las mejoras esperadas en los índices productivos.
Conclusiones
La provisión de sombra artificial durante el verano en terneros de destete anticipado favoreció el desempeño productivo, ya que tendió a mejorar la ganancia diaria de peso y la eficiencia de conversión alimenticia, sin modificar el consumo de materia seca. Asimismo, la disponibilidad de sombra redujo la frecuencia respiratoria, indicando una menor activación de mecanismos fisiológicos asociados con la disipación de calor. Si bien se observaron diferencias en la temperatura rectal, estas no presentarían relevancia biológica. Por otra parte, la provisión de sombra no modificó las concentraciones séricas de glucosa, colesterol, urea ni de las enzimas GOT y GPT. Sin embargo, se observaron cambios en las concentraciones séricas de estos metabolitos, independientemente del tratamiento sombra, los cuales sugieren un posible efecto del estrés térmico sobre el metabolismo de los animales.
Bibliografía
3.Bernabucci N. Climate change: impact on livestock and how can we adapt. Anim Front. 2019; 9(1):3-5. doi: http://10.1093/af/vfy039
4.Summer A, Lora I, Formaggioni P, Gottardo F. Impact of heat stress on milk and meat production. Anim Front. 2019; 9(1):39-46. doi: 10.1093/af/vfy039.
5.Lacetera N. Impact of climate change on animal health and welfare. Anim Front. 2019; 9(1):26-31. doi: http://10.1093/af/vfy039
6.Cartwright, S.L.; Schmied, J.; Karrow, N.; Mallard, B.A. 2023. Impact of heat stress on dairy cattle and selection strategies for thermotolerance: a review. Front. Vet. Sci., 10:1198697. doi: http://10.3389/fvets.2023.1198697
7.Blond B, Majkić M, Spasojević J, Hristov S, Radinović M, Nikolić S, Anđušić L, Čukić A, Došenović Marinković M, Vujanović BD, Obradović N, Cincović M. Influence of heat stress on body surface temperature and blood metabolic, endocrine, and inflammatory parameters and their correlation in cows. Metabolites. 2024; 14(2): 104. doi: http://10.3390/metabo14020104.
8.Kim WS, Lee JS, Jeon SW, Peng DQ, Kim YS, Bae MH, et al. Correlation between blood, physiological and behavioral parameters in beef calves under heat stress. Asian-Australas J Anim Sci. 2018; 31(6):919-925. doi: http://10.5713/ajas.17.0545.
9.Johnson JS, Abuajamieh M, Sanz Fernandez MV, Seibert JT, Stoakes SK, Nteeba J, et al. Thermal stress alters postabsorptive metabolism during pre- and postnatal development. En: Sejian V, Gaughan J, Baumgard L, Prasad C, editores. Climate Change Impact on Livestock: Adaptation and Mitigation. Nueva Delhi: Springer India; 2015. p. 61-79
10.Kvidera SK, Horst EA, Abuajamieh M, Mayorga EJ, Sanz Fernandez MV, Baumgard LH. Glucose requirements of an activated immune system in lactating Holstein cows. J Dairy Sci. 2017; 100(3):2360-2374. doi: http://10.3168/jds.2016-12001
11.Edwards-Callaway LN, Cramer MC, Cadaret CN, Bigler EJ, Engle TE, Wagner JJ, Clark DL. Impacts of shade on cattle well-being in the beef supply chain. J Anim Sci. 2021; 99(2):1-21. doi: http://10.1093/jas/skaa375
12.Collier RJ, Baumgard LH, Zimbelman RB, Xiao Y. Heat stress: physiology of acclimation and adaptation. Anim Front. 2019; 9(1):12-19. doi: http://10.1093/af/vfy031.
13.Bernabucci U, Lacetera N, Baumgard LH, Rhoads RP, Ronchi B, Nardone A. Metabolic and hormonal acclimation to heat stress in domesticated ruminants. Animal. 2010; 4(7):1167-1183. doi: http://10.1017/S175173111000090X
14.EFSA Panel on Animal Health and Welfare (AHAW). Scientific opinion on the welfare of cattle kept for beef production and the welfare in intensive calf farming systems. EFSA J. 2012; 10(5):2669. 166 p. doi: http://10.2903/j.efsa.2012.2669
15.Servicio Meteorológico Nacional. Estadísticas climatológicas de General Pico [Internet]. Buenos Aires: SMN; 2026 [Consultado 20 junio 2026]. Disponible en: https://www.smn.gob.ar
16.Clarke MR, Kelly AM. Some effects of shade on Hereford steers in a feedlot. Proc. Aust. Soc. Anim. Prod. 1996; 21:235-238. Disponible en línea: http://www.asap.asn.au/livestocklibrary/1996/Clarke96.PDF
17.Mader TL, Dahlquist JM, Hahn GL, Gaughan JB. Shade and wind barrier effects on summertime feedlot cattle performance. J Anim Sci. 1999; 77(8):2065-2072. doi: http://10.2527/1999.7782065x
18.Mitlöhner FM, Morrow JL, Dailey JW, Wilson SC, Galyean ML, Miller MF, McGlone JJ. Shade and water misting effects on behavior, physiology, performance, and carcass traits of heat-stressed feedlot cattle. J Anim Sci. 2001; 79(9):2327-2335. doi: http://10.2527/2001.7992327x
19.Mitlöhner FM, Galyean ML, McGlone JJ. Shade effects on performance, carcass traits, physiology, and behavior of heat-stressed feedlot heifers. J Anim Sci. 2002; 80(8):2043-2050. doi: http://10.2527/2002.8082043x
20.Gaughan JB, Tait LA, Eigenberg R, Bryden WL. Effect of shade on respiration rate and rectal temperature of Angus heifers. Anim Prod Aust. 2004; 25:69-72.
21.Gaughan JB, Bonner S, Loxton I, Mader TL, Lisle A, Lawrence R. Effect of shade on body temperature and performance of feedlot steers. J Anim Sci. 2010; 88(12):4056-4067. doi: http://10.2527/jas.2010-2987
22.Davies P, Méndez D, Pighin D. Efecto de la disponibilidad de sombra en verano sobre la ganancia de peso de novillos en engorde a corral en el noroeste bonaerense. General Villegas (Buenos Aires): Instituto Nacional de Tecnología Agropecuaria (INTA). Memoria Técnica 2011 – 2012:180-182
23.Boyd BM, Shackelford SD, Hales KE, Brown-Brandl TM, Bremer ML, Spangler ML, Wheeler TL, King DA, Erickson GE. Effects of shade and feeding zilpaterol hydrochloride to finishing steers on performance, carcass quality, heat stress, mobility, and body temperature. J Anim Sci. 2015; 93(12):5801-5811. doi: http://10.2527/jas.2015-9613
24.Clariget JM, Banchero G, Aznárez V, Perez E, Roig G, Luzardo S, Fernandez E, La Manna A. Mitigación del estrés calórico en novillos terminados a corral. RAPA. 2018; 38(1):1-13
25.Mejia Turcios SE, Rotz CA, McGlone J, Rivera CR, Mitloehner FM. Effects of heat stress mitigation strategies on feedlot cattle performance, environmental, and economic outcomes in a hot climate. Animal. 2024; 18(11):101257. doi: http://10.1016/j.animal.2024.101257
26.Sullivan ML, Cawdell-Smith AJ, Mader TL, Gaughan JB. Effect of shade area on performance and welfare of short-fed feedlot cattle. J Anim Sci. 2011; 89(9):2911-2925. doi: http://10.2527/jas.2010-3152
27.Beede DK, Collier RJ. Potential nutritional strategies for intensively managed cattle during thermal stress. J Anim Sci. 1986; 62(2):543-554. doi: http://10.2527/jas1986.622543x
28.Roland L, Drillich M, Klein-Jöbstl D, Iwersen M. Influence of climatic conditions on the development, performance, and health of calves. J Dairy Sci. 2016; 99(4):2438-2452. doi: http://10.3168/jds.2015-9901
29.Thom EC. The discomfort index. Weatherwise. 1959; 12(2):57-59. doi: http://10.1080/00431672.1959.9926960
30.R Core Team. R: A language and environment for statistical computing. Vienna: R Foundation for Statistical Computing; 2025. Disponible en: https://www.r-project.org/
31.American Humane. American Humane Certified Animal Welfare Standards for Beef Cattle [Internet]. 2017 [Consultado 23 junio 2026]. Disponible en: https://www.americanhumane.org/wp-content/uploads/2025/02/AHS-Beef-Cattle-Standards-2025.pdf
32.Certified Humane. Humane farm animal care – Welfare standards – Beef Cattle [Internet]. 2025 [Consultado 23 junio 2026]. Disponible en: https://certifiedhumane.org/wp-content/uploads/Standard_BeefCattle_Nov-2025-Edition-23.pdf
33.Hagenmaier JA, Reinhardt CD, Bartle SJ, Thomson DU. Effect of shade on animal welfare, growth performance, and carcass characteristics in large pens of beef cattle fed a beta agonist in a commercial feedlot. J Anim Sci. 2016; 94(12):5064-5076. doi: http://10.2527/jas2016-0935
34.Brown-Brandl TM, Eigenberg RA, Nienaber JA, Hahn GL. Dynamic response indicators of heat stress in shaded and non-shaded feedlot cattle, part 1: Analyses of Indicators. Biosystems Engineering. 2005; 90(4):451-462. doi: http://10.1016/j.biosystemseng.2004.12.006
35.Blaine KL, Nsahlai IV. The effects of shade on performance, carcass classes and behavior of heat-stresses feedlot cattle at the finisher phase. Trop Anim Health Prod. 2011; 43(3):609-615. doi: http://10.1007/s11250-010-9740-x
36.Collier RJ, Gebremedhin KG. Thermal Biology of Domestic Animals. Annu Rev Anim Biosci. 2015; 3:513-532. doi: http://10.1146/annurev-animal-022114-110659
37.Kovács L, Kézér FL, Ruff F, Jurkovich V, Szenci O. Correction: Assessment of heat stress in 7-week old dairy calves with non-invasive physiological parameters in different thermal environments. PLoS One. 2018; 13(11): e0208528. doi: http://10.1371/journal.pone.0208528
38.Nazifi S, Saeb M, Rowghani E, Kaveh K. The influences of thermal stress on serum biochemical parameters of Iranian fat-tailed sheep and their correlation with triiodothyronine (T3), thyroxine (T4) and cortisol concentrations. Comp Clin Pathol. 2003; 12(3):135-139. doi: http://10.1007/s00580-003-0487-x
39.Singh SP, Hooda OK, Kundu SS, Singh S. Biochemical changes in heat exposed buffalo heifers supplemented with yeast. Trop Anim Health Prod. 2012; 44(6):1383-1387. doi: http://10.1007/s11250-012-0075-7
40.Hooda OK, Upadhyay RC. Physiological responses, growth rate and blood metabolites under feed restriction and thermal exposure in kids. J Stress Physiol Biochem. 2014; 10(2):214-227
41.Fang W, Wen X, Meng Q, Liu L, Xie J, Zhang H, Everaert N. Running head: Heat affects cholesterol and bile acid alterations in cholesterol and bile acids metabolism in Large White pigs during short-term heat exposure. Animals (Basel). 2020; 10(2):359. doi: http://10.3390/ani10020359
42.Pearce SC, Gabler NK, Ross JW, Escobar J, Patience JF, Rhoads RP, Baumgard LH. The effects of heat stress and plane of nutrition on metabolism in growing pigs. J Anim Sci. 2013; 91(5):2108-2118. doi: http://10.2527/jas.2012-5738
43.Wen X, Wu W, Fang W, Tang S, Xin H, Xie J, Zhang H. Effects of long-term heat exposure on cholesterol metabolism and immune responses in growing pigs. Livest Sci. 2019; 230:103857. doi: http://10.1016/j.livsci.2019.103857
44.Johnson JS, Sanz Fernandez MV, Gutierrez NA, Patience JF, Ross JW, Gabler NK, Lucy MC, Safranski TJ, Rhoads RP, Baumgard LH. Effects of in utero heat stress on postnatal body composition in pigs: I. Growing phase. J Anim Sci. 2015; 93(1):71-81. doi: http://10.2527/jas2014-8354
45.Johnson JS, Sanz Fernandez MV, Patience JF, Ross JW, Gabler NK, Lucy MC, Safranski TJ, Rhoads RP, Baumgard LH. Effects of in utero heat stress on postnatal body composition in pigs: II. Finishing phase. J Anim Sci. 2015; 93(1):82-92. doi: http://10.2527/jas2014-8355
46.Rhoads RP, Baumgard LH, Suagee JK. Metabolic priorities during heat stress with an emphasis on skeletal muscle. J Anim Sci. 2013; 91(5):2492-2503. doi: http://10.2527/jas.2012-6120
47. Roths M, Abeyta MA, Wilson B, Rudolph TE, Hudson MB, Rhoads RP, Baumgard LH, Selsby JT. Effects of heat stress on markers of skeletal muscle proteolysis in dairy cattle. J Dairy Sci. 2023; 106(8):5825-5834. doi: http://10.3168/jds.2022-22678
48.O'Brien MD, Rhoads RP, Sanders SR, Duff GC, Baumgard LH. Metabolic adaptations to heat stress in growing cattle. Domest Anim Endocrinol. 2010; 38(2):86-94. doi: http://10.1016/j.domaniend.2009.08.005.
Declaración de conflictos de interés:
Los autores declaran que no existen conflictos de intereses, tanto en lo concerniente relaciones financieras como a relaciones personales o de otro tipo con otras personas u organizaciones que pudieran influir de manera inapropiada en el presente trabajo
Contribuciones de autor/a/es/as CrediT:
Todos los autores contribuyeron con la concepción y el diseño del estudio. En la ejecución del experimento, los trabajos de campo y la recopilación de datos participaron G.A. Genero, M.A. Boeris, A. Gerena, G.E. Meglia, C.F. Tobal, G.M. Lascalea, I. Azaldegui, M. Aristi y G.H. Pechin. El procesamiento de las muestras de sangre y las determinaciones en laboratorio fue realizado por G.E. Meglia y M.G. Bilbao. El análisis estadístico de datos y la interpretación de los resultados fue realizado por G.A. Genero, G.Jaurena, G.H. Pechin y M.G. Bilbao. La redacción del manuscrito fue llevada a cabo por Gabriel A. Genero, con la colaboración de G. Jaurena, G.E. Meglia, M.G. Bilbao y G.H. Pechin. Todos los autores leyeron y aprobaron la versión final.